青霉素的环是怎样被酶造出来的
一个反应只发生在几秒钟的实验窗口里。为了抓住它,研究人员先在无氧环境中制备针状微晶,把酶、铁和一条尚未弯成药物骨架的短肽放在一起;微晶随传送带经过充满氧气的区域,随后一束极短的X射线打到上面。不同位置、不同反应时间的晶体,留下不同的结构切片。[1]
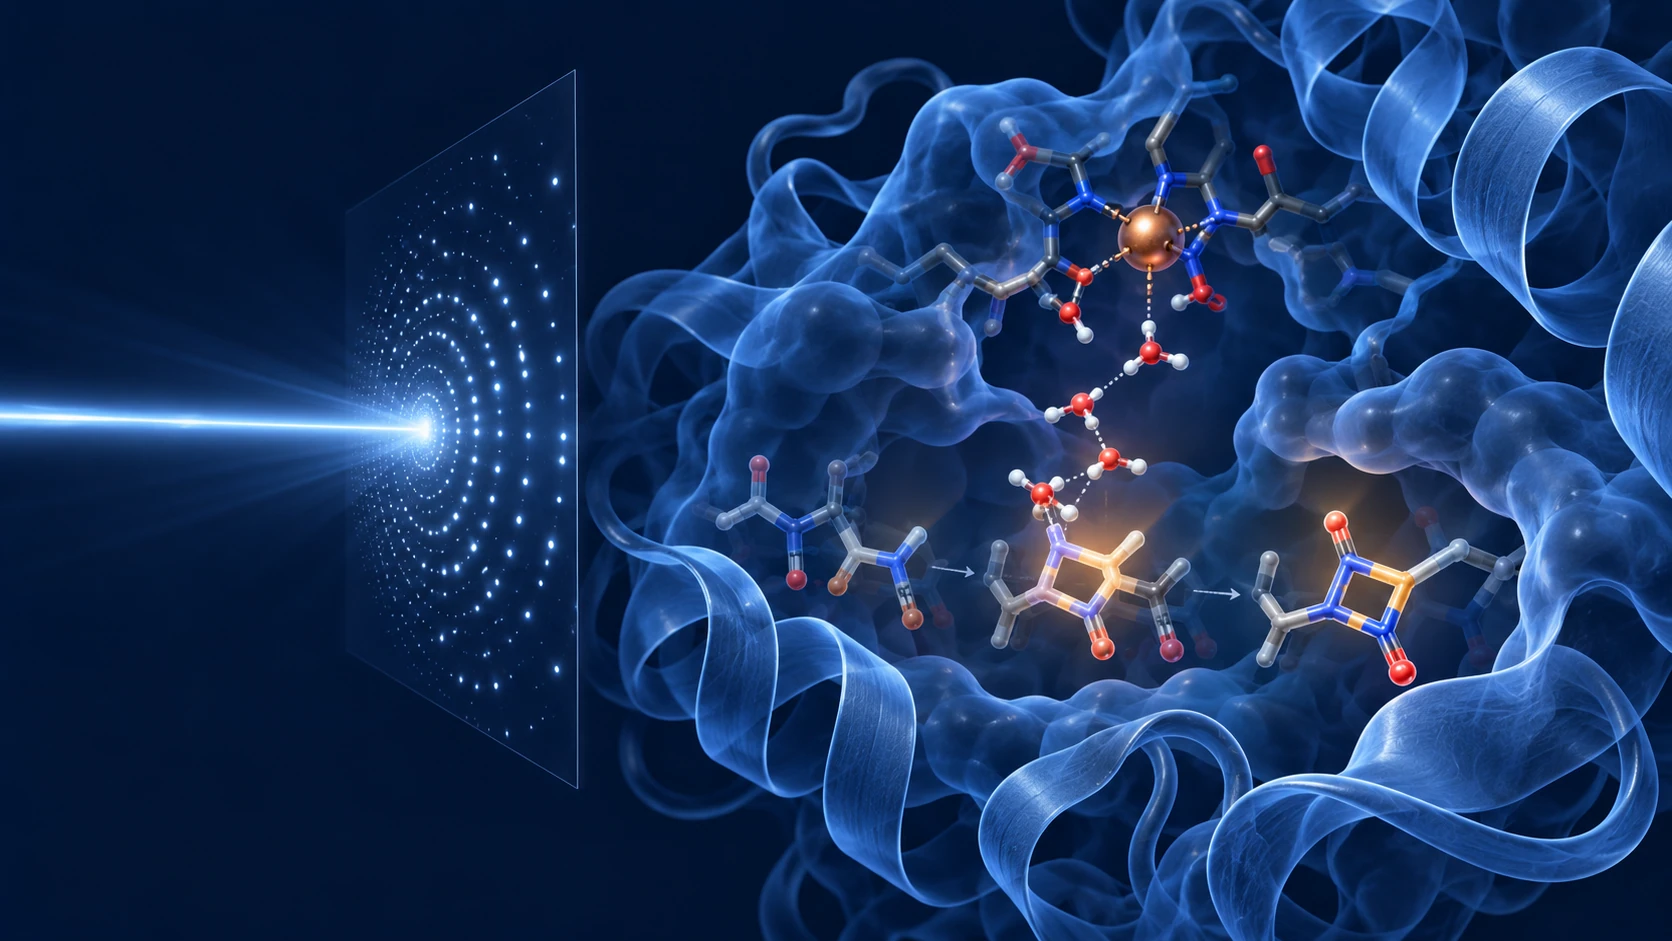
一个反应只发生在几秒钟的实验窗口里。为了抓住它,研究人员先在无氧环境中制备针状微晶,把酶、铁和一条尚未弯成药物骨架的短肽放在一起;微晶随传送带经过充满氧气的区域,随后一束极短的X射线打到上面。不同位置、不同反应时间的晶体,留下不同的结构切片。[1]
研究对象叫异青霉素N合成酶,缩写IPNS。它做的事,听起来比制造一粒药片更基础:让一条三肽与氧反应,折出青霉素家族标志性的四元β-内酰胺环,继而形成另一枚五元环。没有这一步,自然界就无法沿这条路径造出青霉素前体。[1]
2026年10月9日,牛津大学及国际合作团队在《Nature Catalysis》发表结果。标题里的“分子电影”容易让人误解:这并不是摄像机跟着同一个分子拍摄连续视频,而是用许多微晶在不同时间点的衍射图像,配合光谱、化学合成、突变和计算,重建反应经过。它的价值不是画面流畅,而是终于能对一些转瞬即逝的中间状态提出结构证据。[1][2]
一枚环,为什么看了这么久
青霉素的临床历史与牛津紧密相连。二战时期,Howard Florey、Ernst Chain和同事们把它推向可用的抗生素;Dorothy Hodgkin随后解出了青霉素的结构。然而,知道最终分子长什么样,不等于知道酶如何在途中完成每一次断键、成键和质子转移。[2]
IPNS的工作尤其难追。它用铁和氧驱动高活性的化学变化,中间产物寿命短,常规晶体结构更擅长记录相对稳定的起点和终点。2021年,同一研究团队已经用X射线自由电子激光看到氧结合后,活性口袋与蛋白远端一起变化;但关键的环化前中间态仍缺清晰结构。所以,2026年的进展不是“首次发现酶会动”,而是把几个过去只靠间接证据推测的反应环节向前推了一步。[1][3]
团队先让含有底物的微晶在可控氧环境中反应,再于不同秒级时间点读取结构。为了让特别短暂的状态更容易积累,他们还使用氘标记底物;同时检查铁的电子状态,并对与水分子网络有关的酶位点进行突变和溶液实验。这些技术不是彼此独立的宣传数字,而是互相限制解释空间:单张结构图无法说明完整机制,光谱也不能单独告诉我们原子排布。[1]
论文给出的一个意外是:短暂出现的硫醛中间态,硫原子并没有像一些直觉模型预期那样一直抓着铁。随后,研究者获得支持单环β-内酰胺中间态的结构证据,铁—硫相互作用又恢复。水分子也不是静静待在酶里的背景物;活性位点一串水分子及其周围蛋白构象,被研究者认为参与把质子转移引向能够完成环化的路径。[1]
这里最值得记住的不是某个难读的中间体名称,而是酶的“控制”如何体现在空间与时序里:铁提供活性中心,氧启动反应,底物短暂改换姿势,水和蛋白整体运动影响下一步能否走通。科学家看到的不是魔法般“一步合成”,而是一串需要证据拼合的事件。
看懂反应,离新药还有多远
答案是:很远。这项工作研究的是分离酶在微晶和溶液中的反应机制。论文没有宣布新的抗生素,没有展示耐药菌被新分子杀死,也没有动物或患者疗效数据。晶体环境有自身约束,结构反应切片不是体内全过程;研究团队对若干中间态的归属,仍依赖电子密度、光谱、同位素与模型共同解释,后续实验还可以继续检验。[1]
但它并非与现实无关。世界卫生组织的耐药监测提醒我们,现有抗菌药的有效性正面临压力。[4] 机制越清楚,未来设计酶、探索合成路线时,就越少只能凭试错猜测。不过,从一个可解释的酶反应到可规模化的催化工艺,再到真正安全有效的新药,中间横着许多实验、生产和监管门槛。把这篇论文写成“攻克耐药”,既误读了证据,也遮住了下一批研究者真正要做的工作。
青霉素曾改变医学,如今它的合成环节仍在教科学家怎样提问。八十余年的距离,不只是技术进步的速度,也提醒我们:一种药被使用得越广,它背后的基础问题未必就已经结束。
来源与边界:[1] Rabe 等,Nature Catalysis,2026,DOI:10.1038/s41929-026-01618-4;[2] 牛津大学化学系新闻;[3] Rabe 等,Science Advances,2021;[4] WHO GLASS 2025。[2][3]与[1]存在研究团队重叠,不视为新结果独立复现。配图为AI生成概念示意,非实验原图或原子结构图。本文为待人工复审草稿,未获终审或发布授权。